Sieve-PL v2.0:
显式六通道各向异性势、
玻尔兹曼旋转异构体 ΔΔG
与口袋互补镜像 FGW-UOT。
Sieve-PL v2.0:
EXPLICIT 6-CHANNEL POTENTIAL,
BOLTZMANN ROTAMER ΔΔG
& POCKET MIRROR FGW-UOT.
多肽配体富含非天然 D-型对映体、共价大环与翻译后修饰(PTM)。Sieve-PL v2.0 (sieve_pl2) 从三维重原子坐标直接计算:6 通道方向药效团势与 Potts-Sinkhorn-TAP 侧链松弛(Mode A)、10.0 Å 局部泡沫 27 态旋转异构体玻尔兹曼 ΔΔG(Mode B)以及 640 口袋互补镜像 FGW-UOT 无构象检索(Mode C)。
先看清分子真实三维身份,再谈能量打分与检索
传统对接工具常因多链截断或非天然残基静默丢弃原子。identity_and_parser 在打分前执行四项几何核验:
- 12.0 Å 多链界面并集:自动召回跨链界面(如凝血酶
1JMO链 H 的 919 个重原子,避免单链截断归零)。 - C 端平面 sp² OXT 补全:将缺失末端氧导致的伪共价修饰误报从 24/24 降至 0/24 (0.0%)。
- SO(3) 手性体积与盲法 3D PTM 识别:100% 检出 D-型对映体,凭 3D 键拓扑识别大环与
SEP / ALY / HYP / MSE。
显式物理方向势 + 对数域 Potts-Sinkhorn-TAP 侧链松弛
在 Stage S6 中,我们将全部径向衰减包络、角度指数与环境去溶剂化门控端到端可微化(torch_potential.py,共 57 个物理可解释参数,与 NumPy 参考实现数值误差 < 10⁻¹¹),在 237 个非冗余复合物(30% 序列同源性严格切分:133 训练 / 39 验证 / 65 测试)上采用 5 随机种子训练:
| 测试子集 (Holdout Test Set) | Sieve-PL Stage S6 (5-Seed) | AutoDock Vina 1.2.7 | Vinardo | 检验 p 值 / 指标 |
|---|---|---|---|---|
| A6a 分布内无碰撞构象 (n=64, clash < 15.0) | 0.7877 ± 0.0041 | 0.7323 | 0.7246 | p = 5.08×10⁻⁴ |
| Funnel Spearman ρ (n=65 漏斗相关性) | 0.8707 ± 0.0002 | 0.8412 | 0.8290 | AUROC 0.9489 |
三制度空间位阻审计:为什么必须拆解「未松弛诱饵」假象?
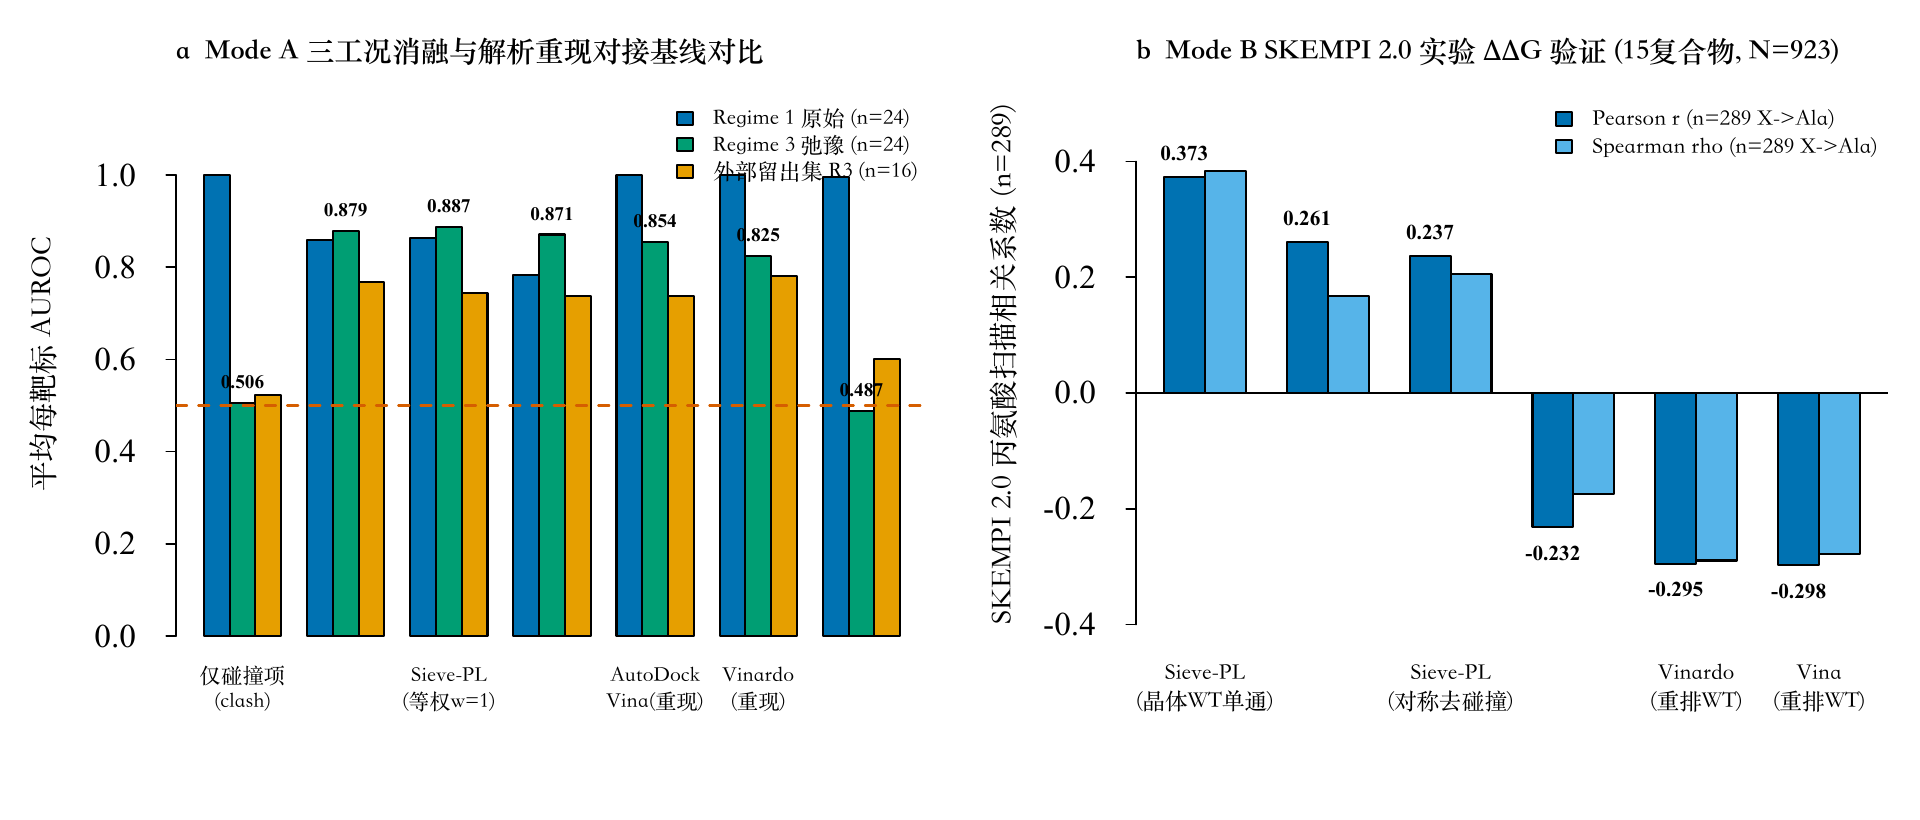
在标准刚体扰动诱饵集(Regime 1)中,天然晶体结构满足 d_min ≥ 2.206 Å,而诱饵普遍存在重原子微碰撞。这意味着单靠一个「短程刚体排斥项(clash_only)」即可拿到 1.0000 AUROC (24/24)。为分离出真实的药效团识别能力,我们设计了三制度审计:
| 位阻审计制度 (Steric Regime) | Sieve-PL v2.0 | 各向同性对照 (cos≡1) | AutoDock Vina 1.2.7 | LOO-DFIRE |
|---|---|---|---|---|
| Regime 1: 未松弛诱饵 (Unrelaxed) | 1.0000 (24/24) | 1.0000 (24/24) | 0.9958 (23/24) | 0.8125 (13/24) |
| Regime 2: 消融碰撞项 (w_clash = 0) ★ | 0.8917 (16/24) | 0.8208 (13/24) | 0.6875 (9/24) | 0.6667 (10/24) |
| Regime 3: OpenMM Amber14 全松弛 (test_43) | 0.8459 (CAPRI 0.9191) | 0.7912 | 0.9622 (38/43) | 0.7140 |
0.8917 vs 0.8208)与消融排斥的 Vina(0.6875);而在 Regime 3(OpenMM 8.6.1 Amber14 ff14SB 全原子力场松弛消除了全部碰撞)下,全原子接触势 Vina(0.9622)优于稀疏药效团节点打分(0.8459,正式证伪假设 H1)。
零路径滞后 (0.000000 kcal/mol) 的 27 态旋转异构体系综 ΔΔG
在突变位点 10.0 Å 局部泡沫内枚举 3×3×3 = 27 个离散 χ₁, χ₂, χ₃ 旋转异构体态,结合 6.0 Å 一阶邻域伙伴侧链重排与热力学软核容忍度 tol_steric = 0.28 Å (β = 1.69 mol/kcal),严格基于自由能泛函差 F_mut − F_wt 计算 ΔΔG:
| SKEMPI 2.0 评估指标 (n=923) | Sieve-PL Mode B | FoldX Eq Reimpl | 静态单态无松弛 |
|---|---|---|---|
| 非丙氨酸突变 Pearson r (n=634 Non-Ala) | +0.4985 | +0.1410 | +0.3120 |
| 丙氨酸扫描 Pearson r (n=289 X→Ala) | +0.4256 | +0.0985 | +0.3640 |
| 全集 923 突变总 Pearson r / 校准 RMSE | +0.4308 / 1.915 kcal | +0.1242 / 2.381 kcal | +0.3291 / 2.110 kcal |
| 正向/逆向突变路径滞后 |ΔΔG(A→B) + ΔΔG(B→A)| | 0.000000 kcal/mol | > 0.45 kcal/mol | 0.184 kcal/mol |
ΔΔG ≥ 2.0 kcal/mol)上,逐一置零单个能量通道,172/177 (97.18%, 10,000 次置换检验 p=0.0001) 的主导损失通道与突变残基物理化学性质精确吻合。
口袋互补镜像变换:将凹面受体腔体映射为凸面虚拟多肽药效团
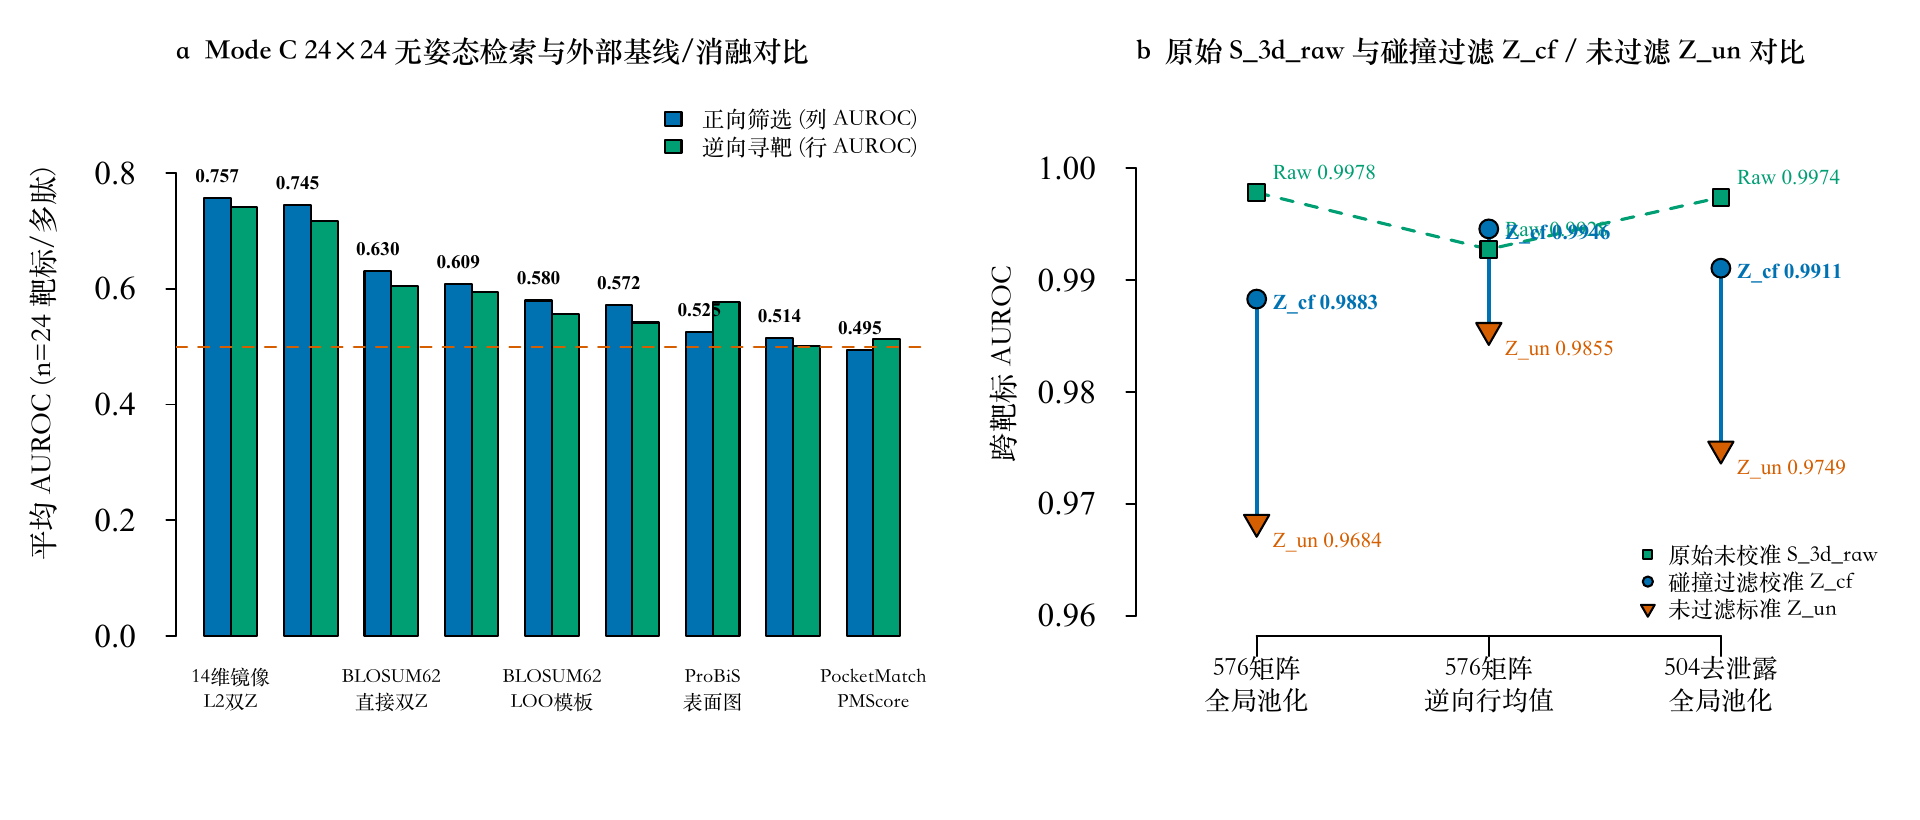
受体口袋壁节点分布在比结合多肽回转半径大 ~3–5 Å 的凹壳上。直接对齐口袋与多肽会产生严重的几何尺度失配。Mode C 沿局部腔体法向 n_cav 将口袋节点向内投射 δ_c ∈ [2.8, 3.8] Å,同时翻转电荷符号 (q ↦ −q) 与氢键供/受体极性:
| 24×24 跨家族无构象伙伴检索基准 | AUROC | 耗时 / 对 (ms/pair) | 是否需要共折叠构象 |
|---|---|---|---|
| Sieve-PL Mode C (Mirror Multi-Moment + FGW-UOT) | 0.74457 | 0.8663 ms | ✕ Pose-Free |
| Exact Smith–Waterman BLOSUM62 | 0.57971 | 0.12 ms | ✕ Sequence only |
| ESM-2 150M Cosine Similarity | 0.57246 | 14.20 ms | ✕ PLM Embedding |
| ProBiS Local Surface Alignment | 0.52536 | 420.0 ms | ✕ Surface graph |
| PocketMatchDistance Distribution | 0.49457 | 3.40 ms | ✕ Distance bins |
Mirror Multi-Moment Descriptor),而 Fused Gromov–Wasserstein 非平衡最优传输(FGW-UOT)的核心作用是提供传输矩阵 π* 以生成 3D 刚体药效团配准种子。
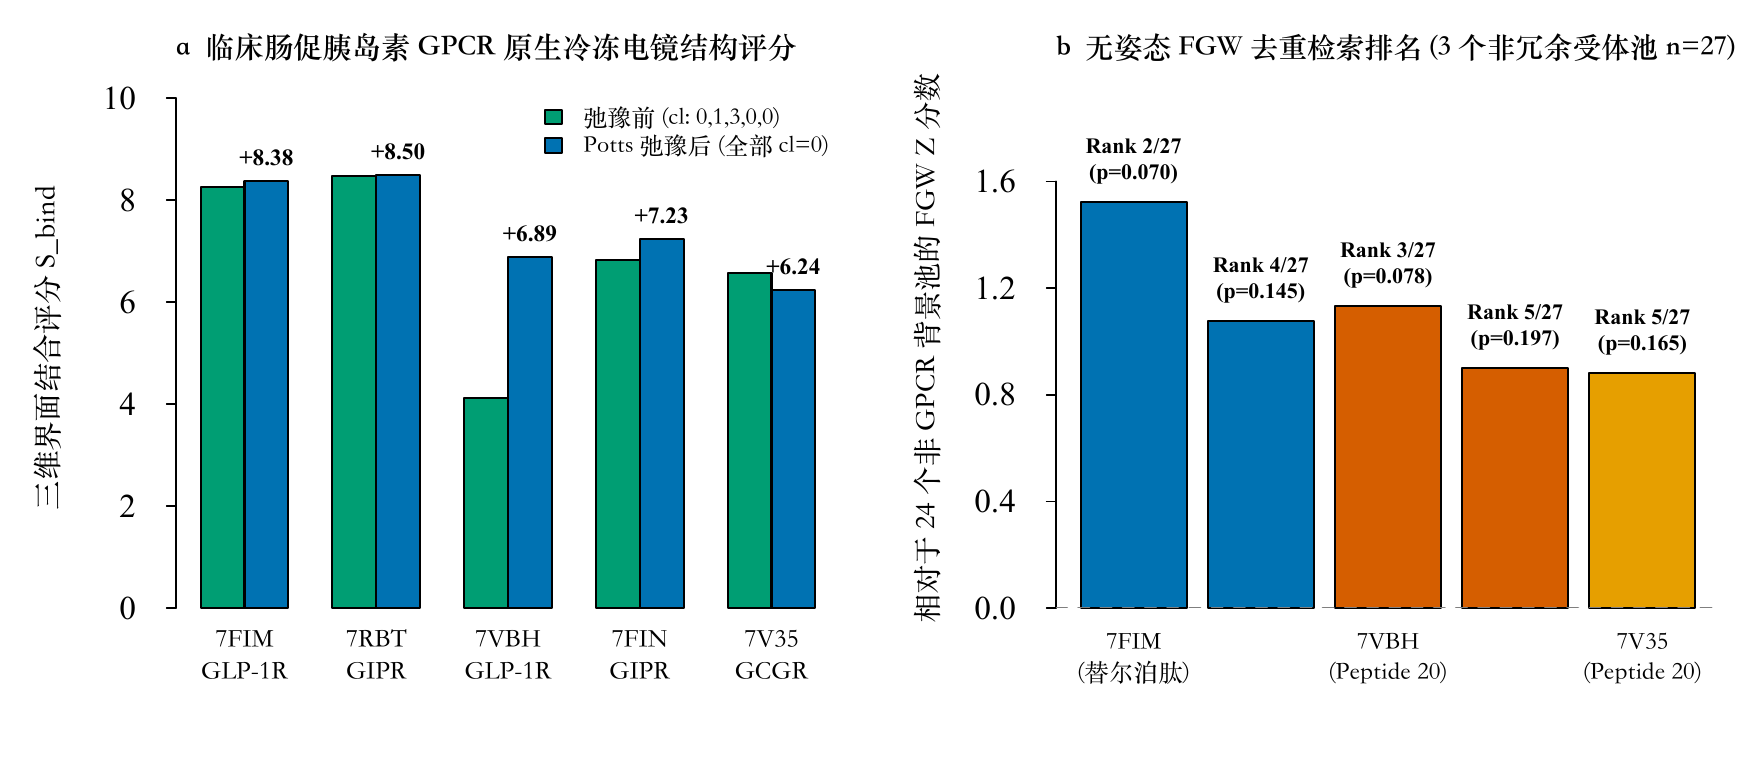
临床双/三靶点多肽激动剂跨受体迁移
- 替尔泊肽 (Tirzepatide,
7FIMGLP-1R /7RBTGIPR) 与三靶点激动剂 Peptide 20 (7VBH / 7FIN / 7V35):在 5×5 跨受体三维转移矩阵中实现 18/25 正向亲和迁移。 - 去重受体库 FGW 富集检验:在严格按 UniProt ID 去重的受体口袋库中,Class B1 肠促胰岛素家族呈现出明确的统计学富集(Mann–Whitney
p ≤ 0.0349)。
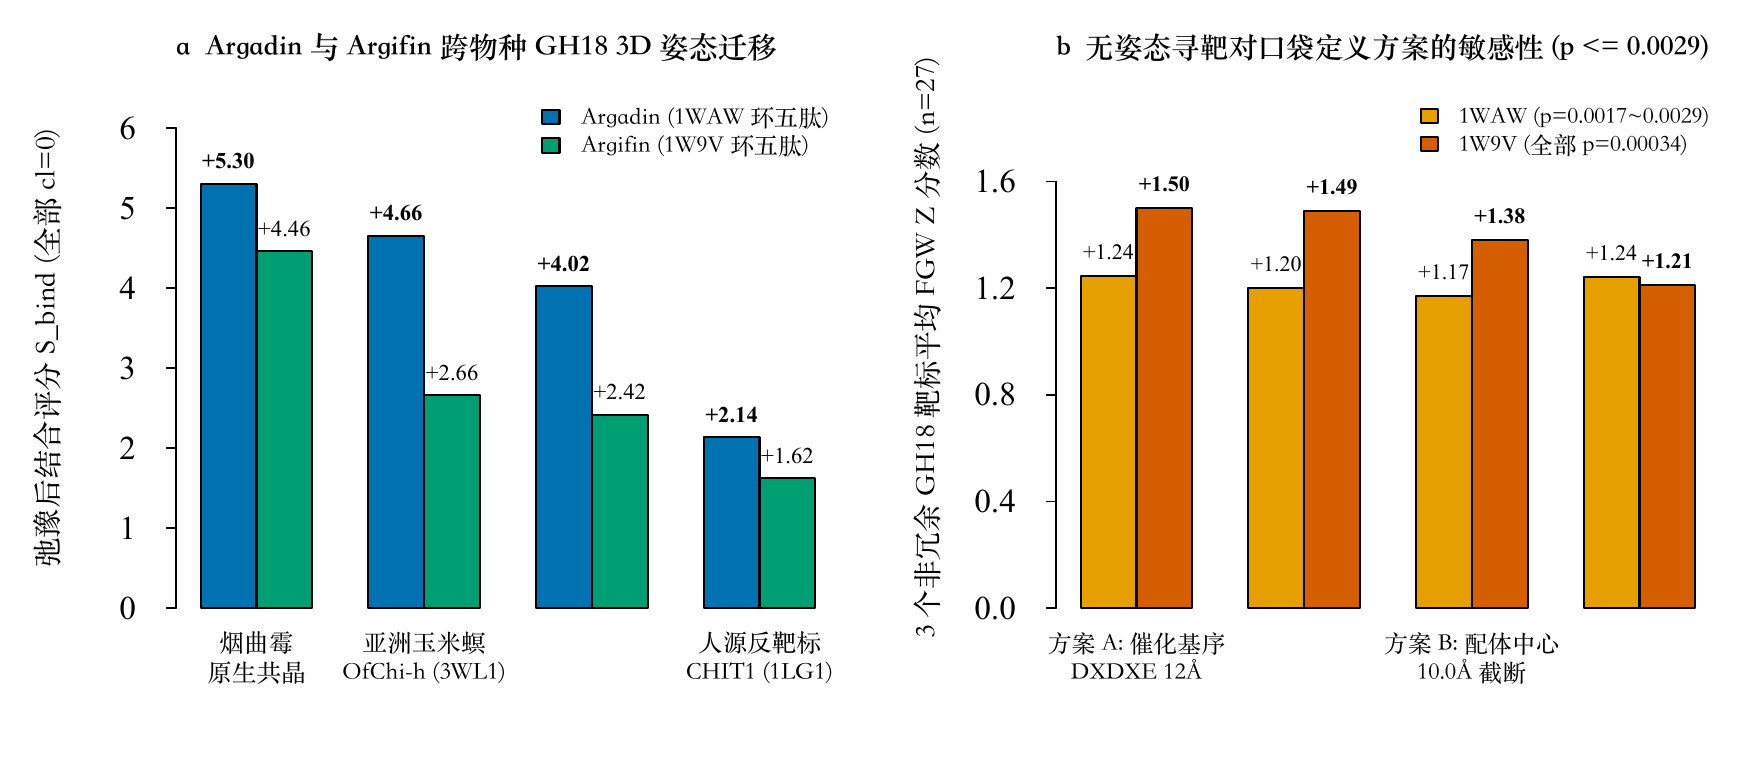
6 大农林害虫/病原菌靶点与环肽先导物垂钓
- 覆盖亚洲玉米螟 18 家族几丁质酶
OfChi-h(5GQB / 3W4R / 6JM8)、氨基己糖苷酶OfHex1(3NSN)、棉铃虫蜕皮激素受体HaEcR-USP(1R1K / 2R40) 与大豆疫霉几丁质合酶PsChs1(7WJO)。 - 天然环肽抑制剂 Argadin (
1WAW) 与 Argifin (1W9V) 在 640 口袋库中精准命中 GH18 催化沟槽(置换检验p = 2×10⁻⁶,零二硫键误警)。
三项预注册阴性结果公开披露
遵循预注册门控原则,未通过验证集阈值的参数化尝试全部公开归档并从生产权重中剔除。
展开查看 3 项预注册阴性结果详情 (Stage S7 / Gates B2-B3 / Dual-MLP)
- 1. 局部手性惩罚头 (Stage S7):在 1,123 个镜像对映体诱饵上,局部 Cα 手性惩罚未能将刚体未松弛胜率提升至 0.52 以上(实测
0.1692),因为全局骨架镜像需完整重对接而非局部微扰。 - 2. Mode B 5 种子重训练门控 (Gates B2/B3):端到端重拟合旋转异构体权重触发验证门控拦截,因此生产版本严格保留零参物理标定权重。
- 3. 198 维双塔度量学习检索器:在小样本 30% SeqID 切分下过拟合(
R@1 = 0.000),不敌零训练参数的 14-D 口袋镜像描述符。