Sieve-MC 0.8:
01 视觉读取 · 02 符号软筛 ·
03 期望信息增益追问。
连接离散博弈与湿实验主动设计。
Sieve-MC 0.8:
01 SEE · 02 SOFT SIEVE ·
03 EIG ACTIVE ASK.
BRIDGING DEDUCTION & WET-LAB DESIGN.
Sieve-MC 0.8(原生 macOS MCGuesser.app / 27.1M 参数 MCG-1)是软筛方程最初的工程试验场:先用 Stride-16 软行列池化与 Cell-JEPA 读取截图(01 See),再通过元认知门控 λ 融合 589 实体符号张量 Φ[g,t,c](02 Sieve),最后按摊销期望信息增益 EIG(g) 挑选下一步最优探针(03 Ask),并与 Sieve-3D 湿实验主动设计严格同构。
18 毫秒内完成看图、查表与信息熵决策的原生桌面工具
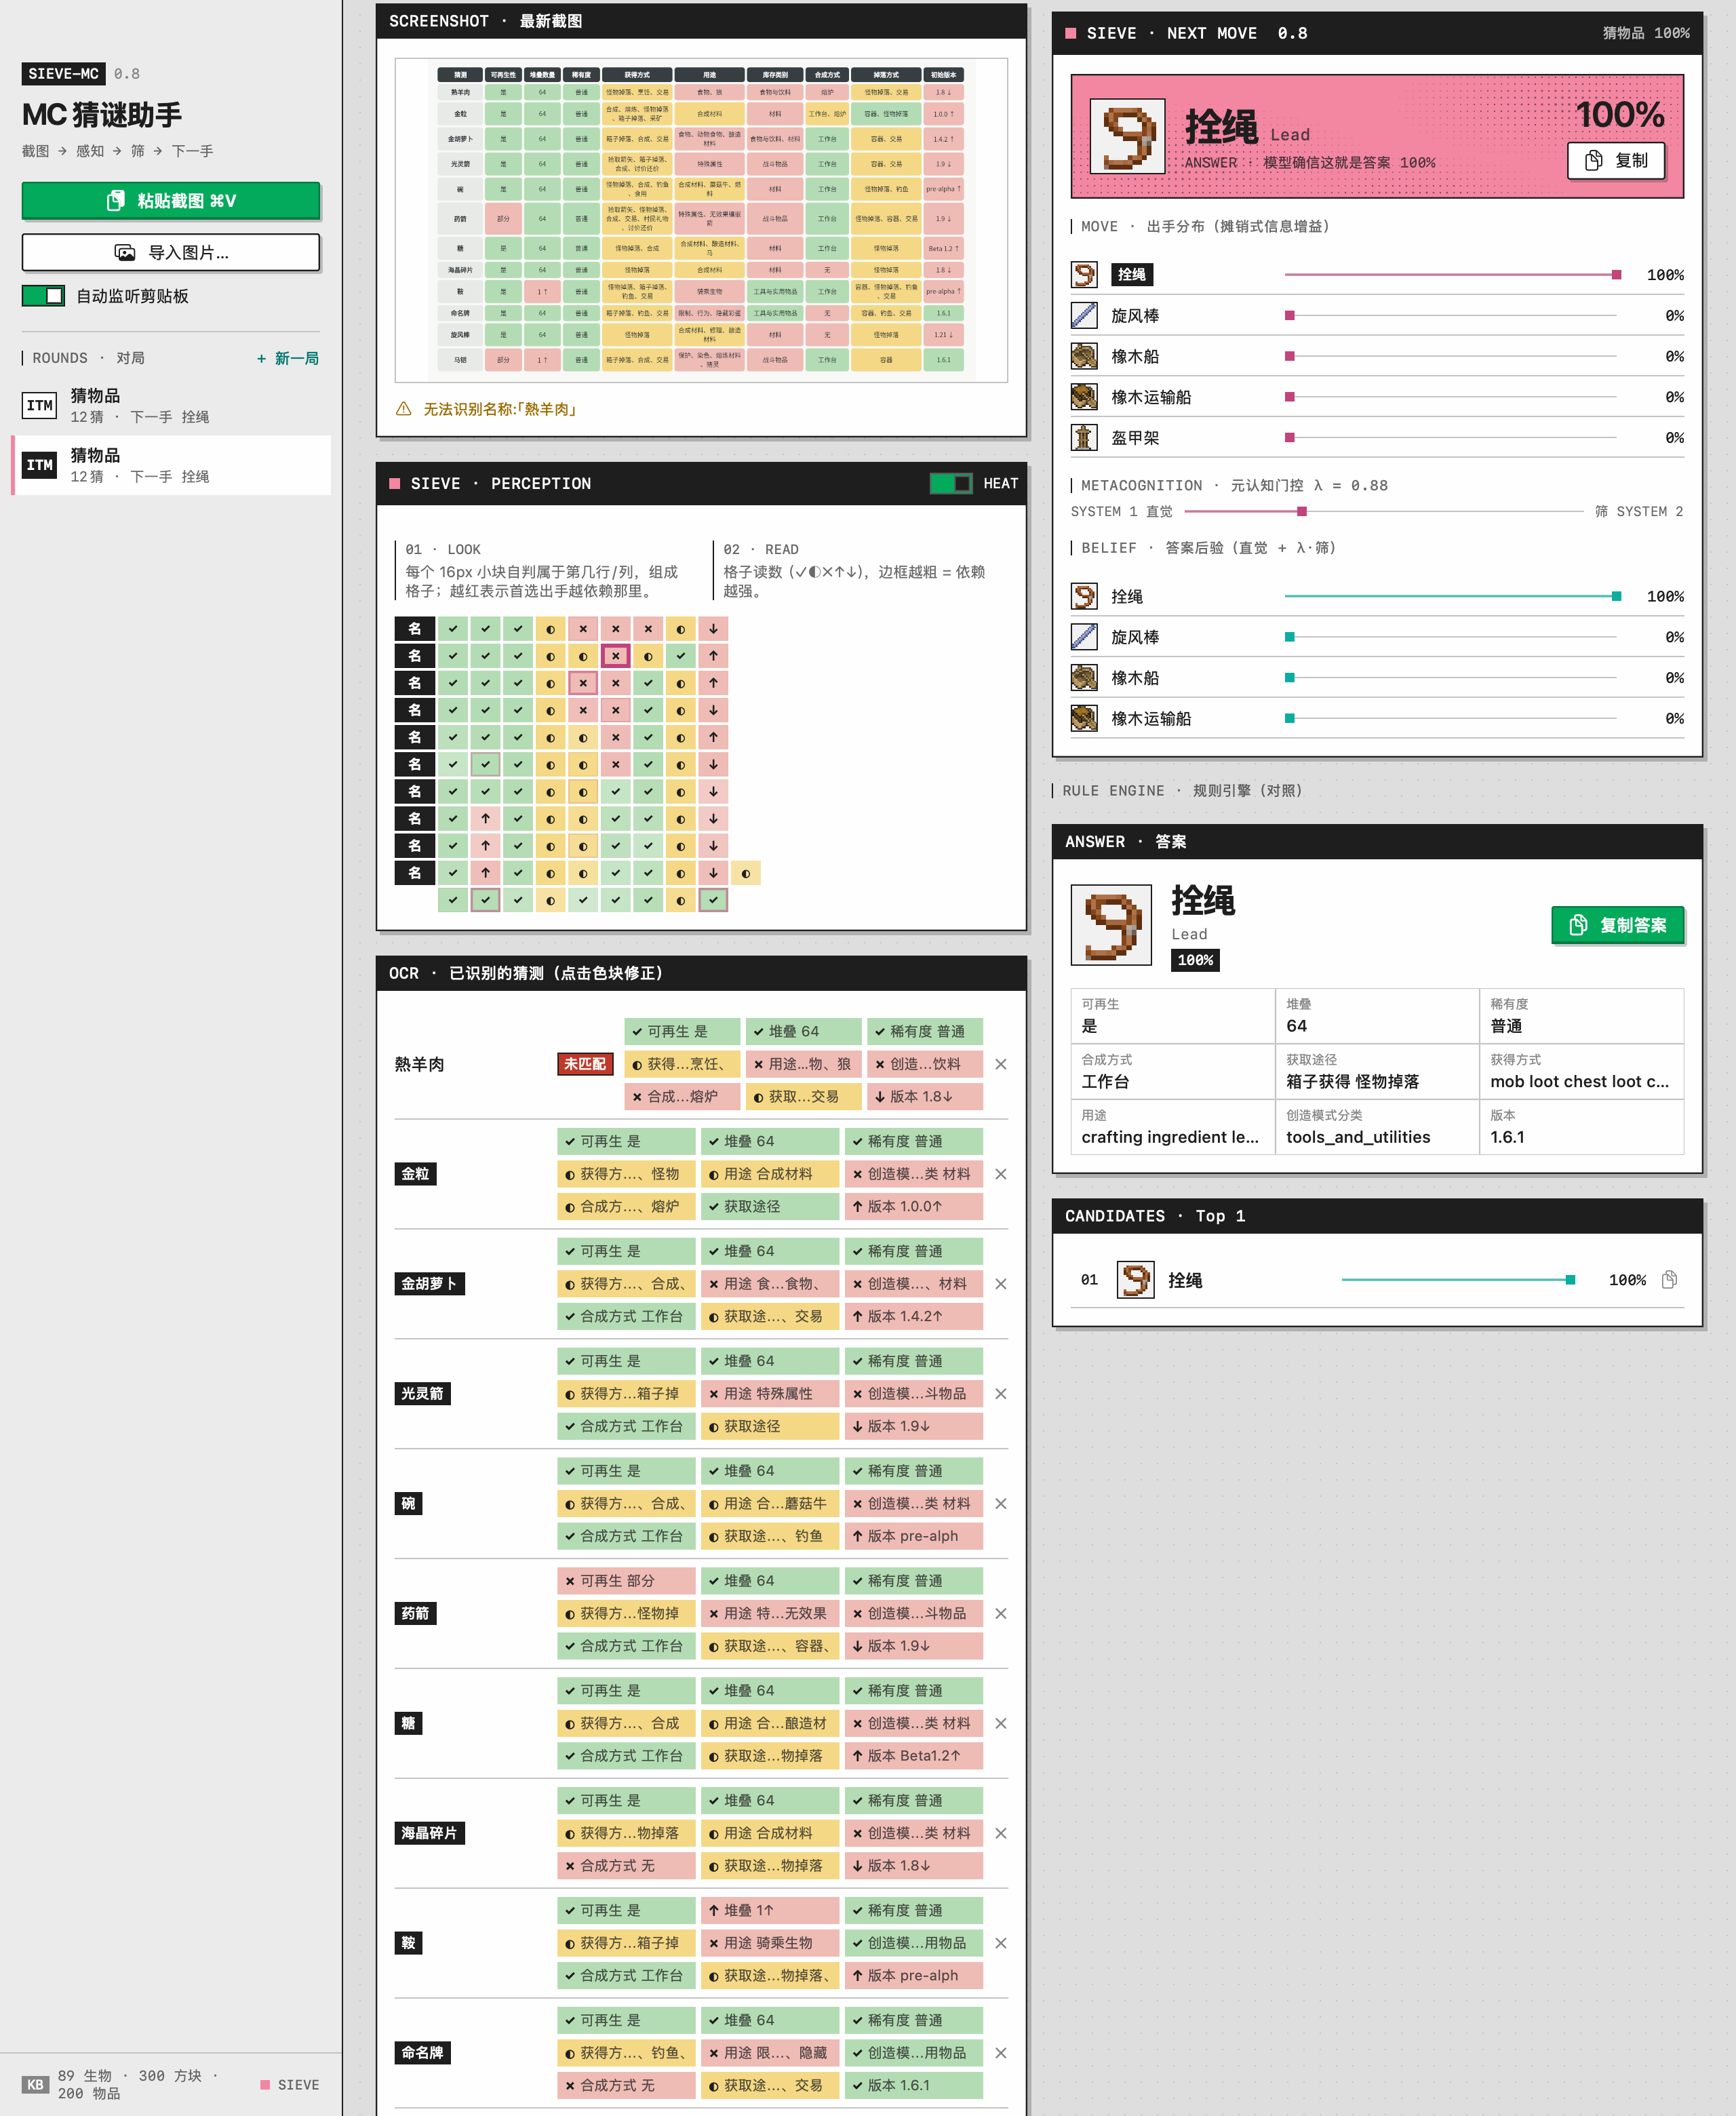
SIEVE-MC 0.8(MCGuesser.app)奠定了 Kiln 浅色网格设计语言。直接拖入或粘贴游戏截图,双栏即刻同步输出视觉注意力、逐格读数与软筛后验:
- 01·LOOK(16px 注意力叠加):将 Swin + Stride-16 提取的 24×24 单元格激活度直接叠在原图上方。
- 02·READ(Vision OCR ✎ 纠偏):融合视觉猜词头与 macOS
VNRecognizeTextRequest文本锚点,自动标出纠偏格。 - SIEVE POSTERIOR(λ 门控 + EIG 追问):实时读出
λ = 3σ(gate(feats)),并列展示目标后验与最大信息增益探针。
显式软行列外积池化 + 无教师隐空间自监督
以 3×conv3x3 干细胞保留 1px 颜色边界,在 Stride-16 特征图上执行软行列外积池化(64 图诊断准确率从 DETR 自由查询的 6% 升至 94%),配合随机遮蔽 1–4 格的 Cell-JEPA 与 SIGReg 高斯正则。
589 实体不可学习规则张量 + 元认知门控 λ
将 589 个实体(89 生物 / 300 方块 / 200 物品)预编译为不可学习关系张量 Φ[g,t,c] ∈ {0..7}。Soft Sieve 累加单元格视觉对数似然 S[t],并由元认知门控 λ = 3σ(gate(feats)) 与先验 z₁[t] 加权合成后验。
摊销期望信息增益 EIG(g) + 孪生等价类消歧
训练摊销 EIG 预测头并执行 Self-Play DAgger 在线纠偏:候选池 |C| > 2 时优先挑选把候选集切分最均匀的探针 g(平均步数从 4.01 降至 2.77 步);|C| ≤ 2 时直接提交后验峰值。
切换三类真实评测对局,调节元认知门控 λ
下方三个对局均取自真实评测库:(A)物品模式以「纸 Paper」高信息熵起手、2 步锁定「拴绳 Lead」;(B)方块模式 4 个 1.14 村民工作台孪生消歧;(C)生物模式「鲑鱼 ≡ 热带鱼」等价类诚实输出。
从 v1 查询坍缩(6%)到 v9tw 闭环自博弈(2.77 步)的实测轨迹
| 版本 / 模型 | 核心机制变更 | 64图诊断 / 候选覆盖 | 闭环自博弈步数 ↓ |
|---|---|---|---|
| v1–v5 (DETR Query) | 自由交叉注意力查询盲搜 24×24 特征图(无框监督下查询坍缩) | 6.0% (Diag) | 未收敛 |
| v6 (Stride-16 + JEPA) | 3×conv3x3 干细胞 + Stride-16 软行列池化 + Cell-JEPA + SIGReg | 94.0% (Diag) | 4.35 steps |
| v7 (System 1 Only) | 仅使用视觉主干与离线教师蒸馏策略头(未挂载符号算子 Φ) | 76.3% (Set Cov) | 4.01 steps |
| v7 + Zero-Shot Soft Sieve | 固定 v7 视觉权重不变,直接零样本挂载 Φ[g,t,c] 软筛后验与 λ 门控 | 85.8% (246/274) | 3.18 steps |
| v8 / v9tw (Sieve + EIG + DAgger) | 联合训练 Soft Sieve + 摊销 EIG 辅助头 + Self-Play DAgger + 孪生消歧 | 92.3% (36/39 Real) | 2.77 – 2.83 steps |
| Exact EIG Teacher (Oracle) | 完美感知下穷举 O(|C|·|V|) 信息熵的理论全知上界(物品模式 2.48 步) | 100.0% (Oracle) | 2.61 steps |
三组关键对照实验结论
冻结 v7 视觉权重并零样本外挂符号张量 Φ[g,t,c],候选覆盖率即从 76.3% 升至 85.8%(246/274 状态与 Oracle 完全重合)。
经 3 轮 Self-Play DAgger 在线重标后,闭环自博弈平均步数从 4.01 步压降至 2.77 步(物品模式以「纸 Paper」起手仅 2.48 步)。
当两个实体在观测列属性完全一致(如「鲑鱼 ≡ 热带鱼」),v9tw 诚实输出 50% / 50% 等概率并依次提交,彻底消除孪生死循环。
在有限实验预算下锁定未知分子构象,与在含噪截图中锁定未知实体服从同一组方程
在有限湿实验预算下锁定未知结合姿态或变构构象,本质上是一个主动贝叶斯筛(Active Bayesian Sieve)问题。Sieve-MC 验证的四项算子与 Sieve-3D / Sieve-PL 中的结构生物学实验设计一一对应:
展开查看 Sieve-MC 0.8 ≅ Sieve-3D 六维数学算子完整同构对照表
| 统一数学算子 | Sieve-MC 0.8 (MCG-1 主动视觉推理) | Sieve-3D / Sieve-PL (结构生物与湿实验主动设计) |
|---|---|---|
t ∈ {1..N} (Target Hypothesis) |
589 个候选实体(89 生物 / 300 方块 / 200 物品)中的隐藏目标答案 | 候选蛋白构象系综、变构口袋或配体结合姿态池 {x_t}(如 AF3/Boltz/Vina 采样的诱饵集) |
g_r (Active Probe Row) |
第 r 步提交的猜测词条(例如物品模式先猜「纸 Paper」) | 第 r 轮执行的湿实验探针:定点丙氨酸扫描突变(Alanine Scan)、竞争性单抗表位阻断、交联质谱(XL-MS)或 SAR 分子探针 |
Φ[g_r, t, c] (Forward Law) |
不可学习的百科规则比较算子(返回绿/黄/灰/上下箭头 8 种离散关系码) | SE(3) 不变生物物理正演算子:若真实构象为 t,探针 g_r 在通道 c(ΔΔG、短程刚体排斥、氢键、交联距离)上产生的物理响应 |
P_c(r, c | ·) (Noisy Observation) |
从压缩截图中读取的第 (r,c) 格视觉分类概率 + Vision OCR 文本锚点 | 带实验测量误差的湿实验读数似然(SPR/ITC 亲和力曲线、DMS 测序丰度或低分辨率冷冻电镜密度) |
L[t] = z₁[t] + λ·S[t] (Metacognitive Gate) |
截图清晰且 OCR 锚点一致时调高 λ 信任符号消去;截图模糊或首步空盘时依赖 System 1 先验 z₁[t] | 靶点与训练集高度同源时信任共折叠先验(AF3/Boltz z₁);遇到 OOD 新骨架、D-型对映体或变构口袋时调高 λ,强制服从短程排斥与热力学循环(S[t]) |
EIG(g) = −Σ_o m_{go} log m_{go} (Next Probe Design) |
选出能把剩余候选实体池切分得最均匀的下一个猜测词(将平均步数压至 2.77 步) | 在合成或表达前,选出单次实验即可最大化区分竞争结合姿态假说的关键突变位点或分子探针,用 2–3 个点突变替代盲目合成筛选 |